类器官技术正在经历一次重要转向。
早期类器官研究主要关注:能否在体外培养出具有特定器官特征的三维结构?随着技术不断成熟,研究者开始提出更高要求:模型能否重现真实组织的细胞组成、空间结构、发育成熟度及微环境互作?
这意味着,类器官不能只是由目标细胞组成的三维“细胞球”,还需要在一定程度上重建驱动组织形成和功能发挥的关键过程。
换句话说,“细胞存在”并不等于“组织功能存在”。
复杂类器官模型的核心价值,正是通过引入多细胞谱系、空间结构、生物力学环境以及血管、免疫等微环境要素,缩小体外模型与真实人体组织之间的差距。
为什么需要构建复杂类器官?
当前许多类器官模型仍存在四方面局限。
1、细胞组成不完整
部分模型主要由单一上皮谱系构成,缺少间质细胞、血管细胞、免疫细胞和神经细胞等重要组分,难以重现组织内部的多细胞协作。
2、组织结构不完整
类器官可能形成囊泡或无序细胞团,却缺少真实器官中的隐窝—绒毛轴、分支网络、腔室分区及血管网络等高级结构。
3、成熟度有限
多能干细胞来源的类器官往往更接近胚胎或胎儿阶段。长期培养还可能受到氧气和营养扩散限制,出现中心坏死;部分肿瘤类器官则可能长期维持增殖状态,难以呈现终末分化特征。
4、微环境缺失
基质刚度、流体剪切力、氧梯度以及血管、免疫、神经和微生物信号都会影响组织发育与功能,但这些因素在常规静态培养体系中往往无法得到完整体现。
因此,复杂类器官的构建并不是简单增加细胞种类,而是要恢复细胞之间以及细胞与环境之间的关键相互作用。
复杂类器官的设计蓝图来自发育生物学
真实器官并非由不同细胞随机堆叠而成。它是在特定发育程序中,通过细胞命运决定、空间重排、谱系互作和力学刺激逐步形成的。
构建复杂类器官时,需要重点考虑四项原则。
时序性:不同细胞需要在合适的发育窗口出现。信号加入得过早或过晚,都可能使细胞偏离预期命运,或者导致不同谱系的成熟阶段无法匹配。
空间性:细胞所在的位置、组织边界、形态梯度和几何结构都会影响细胞命运。复杂类器官不仅要包含目标细胞,还应尽可能恢复这些细胞在组织中的空间关系。
互作性:上皮与间质、血管与实质、神经与肌肉、免疫与上皮之间存在双向信号。正是这些相互作用推动了组织分区、成熟和功能建立。
物理环境:基质刚度、机械拉伸、流体剪切力、氧分压及电刺激等物理线索同样参与器官形成。仅依靠可溶性生长因子,通常不足以重现完整的组织功能。
基于这些原则,目前复杂类器官的构建可以归纳为五条主要技术路径。
策略一:精准调控发育信号,提高上皮自身复杂性
这是多数类器官平台的基础策略。
通过优化培养基、分化因子和信号调节剂,可以控制干细胞的命运选择,促进目标细胞谱系形成。常见调控对象包括WNT、BMP、FGF、IGF和Notch等信号通路。
这一策略的关键不只是“加入什么因子”,还包括因子的组合与浓度、加入顺序、作用时间、发育窗口以及细胞外基质的选择。
Fujii等建立了一种受肠道干细胞生态位启发的培养条件,以IGF-1和FGF-2等信号支持人肠道类器官长期扩增,同时更好地维持潘氏细胞、肠内分泌细胞等上皮细胞的多样性,为“增殖与分化能否兼顾”提供了新的解决方案[1]。
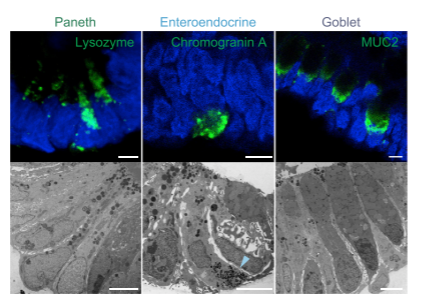
图1|生态位启发培养条件维持人肠道类器官的上皮细胞多样性
类似的动态调控也被应用于乳腺类器官。Yuan等通过协调细胞外基质、环境信号和生理激素周期,构建了能够模拟青春期、泌乳及退化等过程的乳腺微腺体模型[2]。
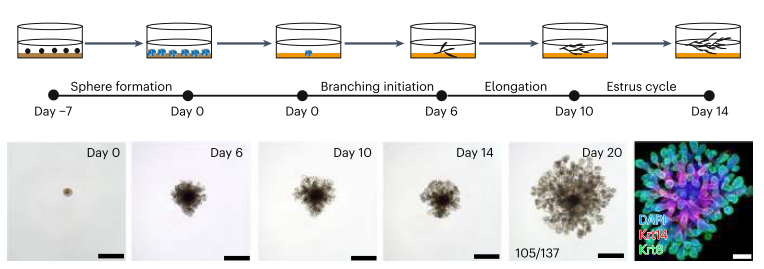
图2|动态乳腺微腺体的构建与形态发育过程
精准信号调控具有较强的生物学可解释性,也更容易形成标准化操作流程。但体外体系仍难以完全复制胚胎发育中的时空信号梯度,模型也可能停留在胎儿样或未成熟状态。
策略二:共发育--让多谱系在同一过程中形成
与培养完成后再加入另一类细胞不同,“共发育”强调多个谱系在同一培养体系中同步产生,并在组织形成过程中建立内源性相互作用。
其基本思路是:从共同祖细胞或相容的早期细胞群出发,通过分阶段调控发育信号,使两种或多种谱系在适当时间发生分化,逐渐形成组织内部的互作网络。
2025年发表于《Nature》的研究构建了多谱系人胃类器官——gastroid。模型通过多个胚层的共同发育,形成具有胃底—胃窦双极分区的上皮腔室,同时包含间质和神经细胞。研究发现,非内胚层细胞,特别是神经细胞群,可通过WNT信号参与胃区域化过程[3]。
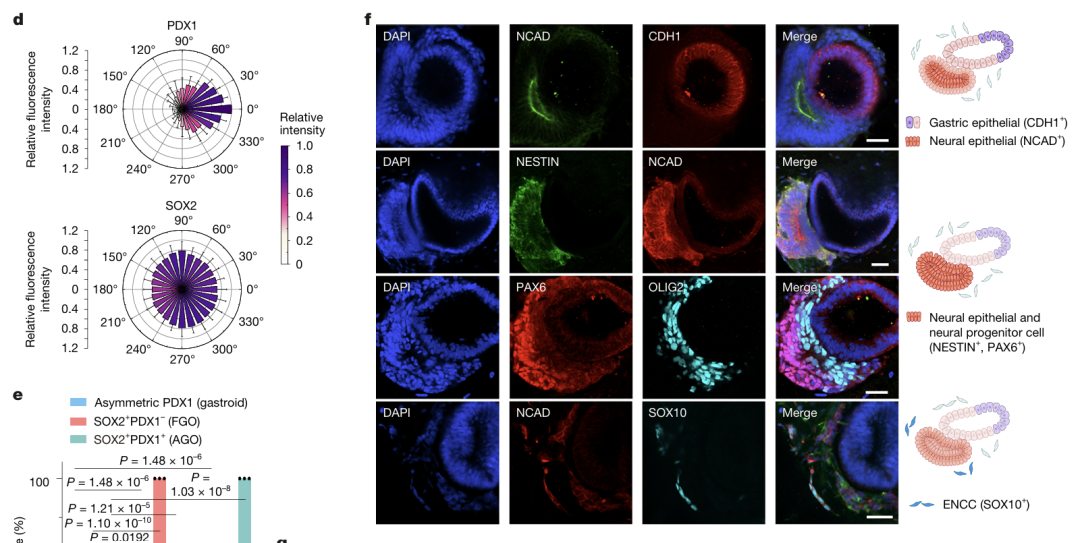
图3|多谱系人胃类器官中的区域化及神经谱系形成
这一案例说明,共发育的价值并不只是增加细胞数量,而是让不同谱系在组织形成早期便参与彼此的命运决定和空间组织。
共发育适合研究发育异常、谱系命运决定和组织再生,但不同谱系对培养条件的需求可能互不兼容,细胞比例、分化效率、批次稳定性和质量控制均具有较高难度。
策略三:构建类器官组装体
类器官组装体,即Assembloid,是将分别诱导获得的细胞群或类器官模块,在适当发育阶段进行可控组装与融合。
与共发育相比,组装体更强调“先独立构建,再组合成系统”。其典型流程包括独立诱导、细胞身份鉴定、发育阶段匹配、比例与空间关系设计、联合培养以及结构和功能验证。
Koike等将来自前肠和中肠边界的球状体进行组合,建立了肝—胆—胰多器官模型。不同组织边界之间的互作推动了肝、胆道和胰腺相关区域的连续形成,使模型能够重现早期多器官发生过程[4]。
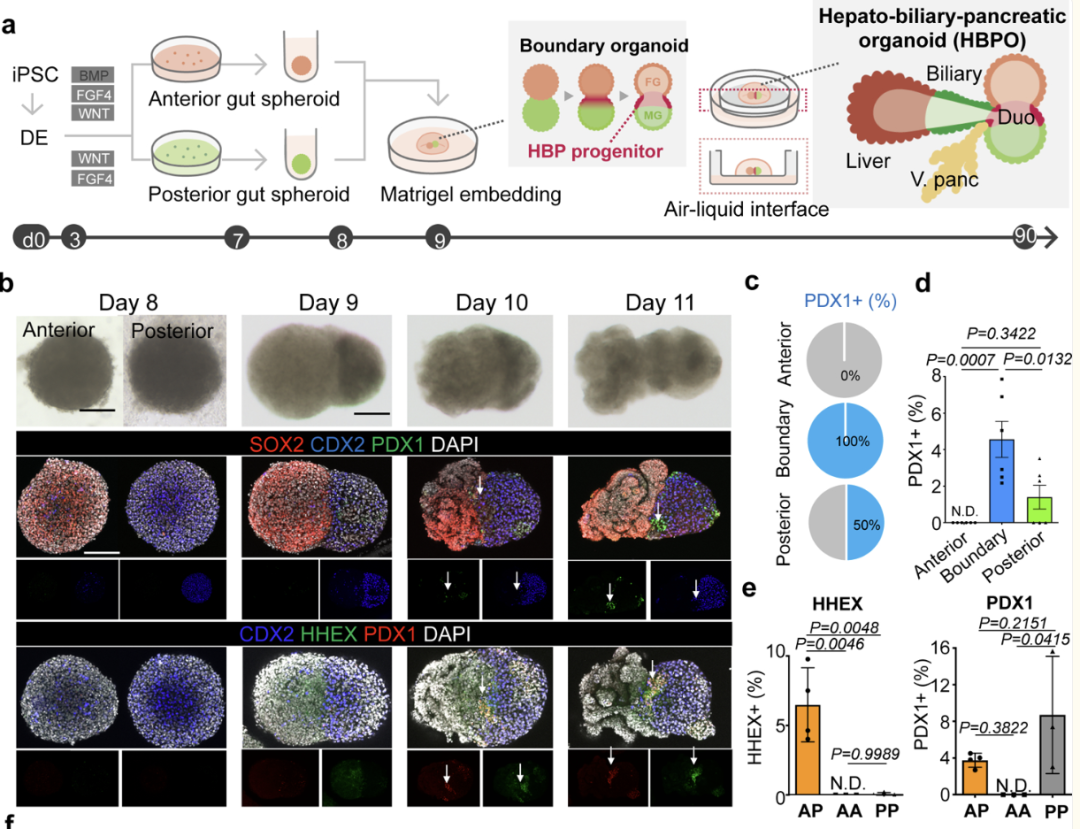
图4|肝—胆—胰多器官组装体的构建流程
组装体具有模块化程度高、实验变量相对可控、便于引入多谱系等优势,适合研究跨组织互作、疾病机制和个体化治疗反应。
但融合成功并不等于功能整合。研究者仍需要验证组织边界、细胞连接、空间定位及功能输出,并排除不同模块仅仅发生物理黏附的可能。
策略四:引入血管、免疫等特定细胞组分
对于部分研究问题,并没有必要全面提高模型复杂度,而是可以围绕目标机制,有选择地加入关键细胞。
血管系统:不只是“运输管道”
血管不仅输送氧气和营养,还会通过旁分泌信号影响组织发育、成熟与修复。
当前常用的血管化路径包括整体诱导、与内皮细胞共培养、器官芯片培养、3D生物打印以及移植至动物组织等。
2025年发表于《Science》的研究进一步利用人多能干细胞来源的gastruloid,构建出具有空间组织和分支血管网络的心脏及肝脏类器官,为研究人类器官早期血管发生提供了新模型[5]。
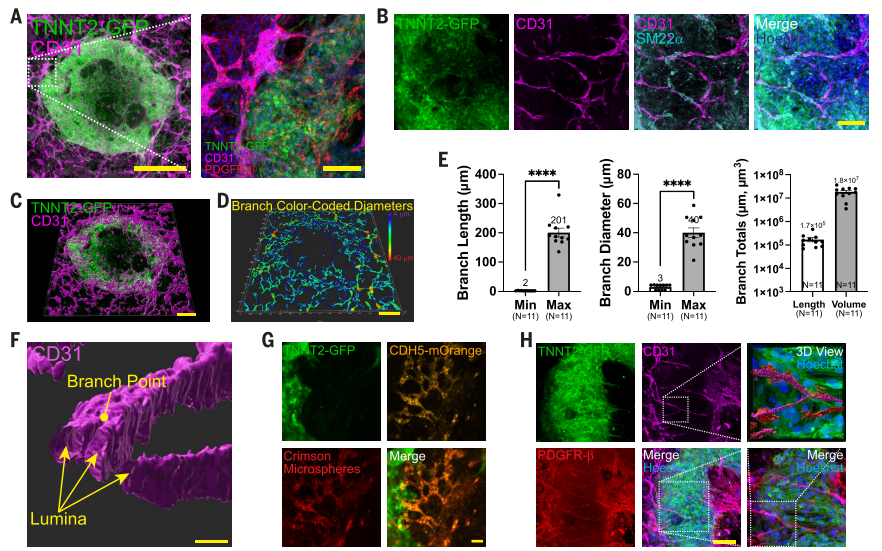
图5|人多能干细胞来源类器官中的分支血管网络
除共培养外,物理流动同样能够促进血管化。Homan等将肾类器官置于流体芯片中培养,发现流动条件可以扩增内源性内皮祖细胞,促进具有管腔的血管网络形成,并改善足细胞和肾小管的成熟程度[6]。
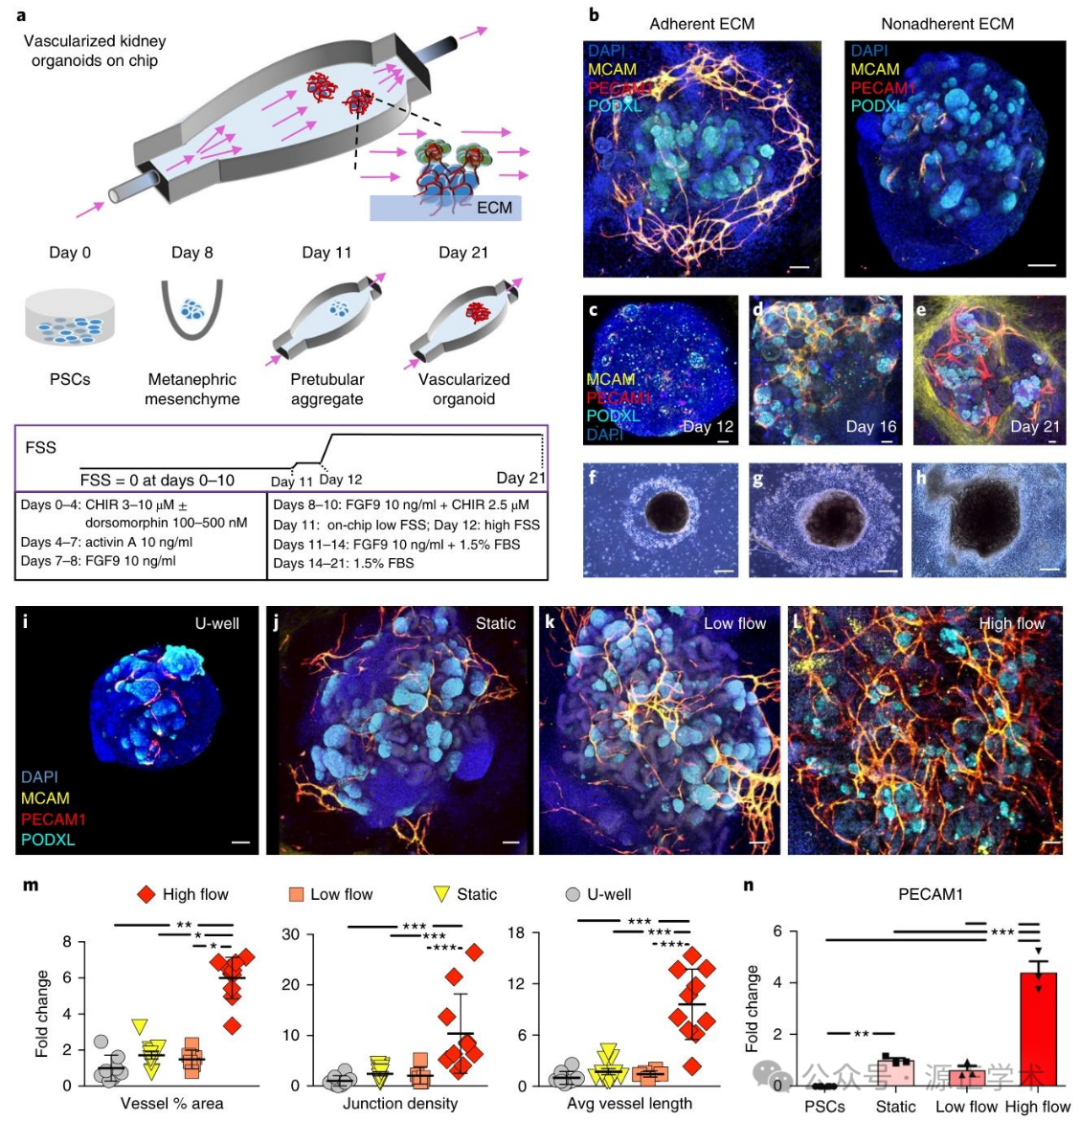
图6|流体芯片促进肾类器官血管化和成熟
不过,血管标志物阳性或血管样结构出现,并不代表已经形成成熟、可灌注且具有屏障功能的血管网络。血管化评价还需要包括管腔连续性、灌流能力、屏障功能和组织连接情况。
免疫系统:重建炎症与免疫治疗反应
免疫细胞参与胚胎发育、血管稳定、上皮修复、炎症反应和感染防御,也是肿瘤微环境的重要组成部分。类器官在免疫学研究中的应用已经从简单加入免疫细胞,逐步发展到重建免疫细胞与组织之间的动态关系[7]。
免疫细胞可以通过多种方式整合进类器官体系,包括加入多能干细胞来源的免疫谱系细胞、加入患者外周血单个核细胞、保留原始组织中的免疫成分,以及将类器官移植至动物体内。
Cattaneo等建立了肿瘤类器官与自体外周血淋巴细胞共培养的方法,可以扩增肿瘤反应性T细胞,并通过细胞因子释放、脱颗粒和类器官杀伤实验评价其功能,为患者层面的免疫治疗研究提供了标准化流程[8]。
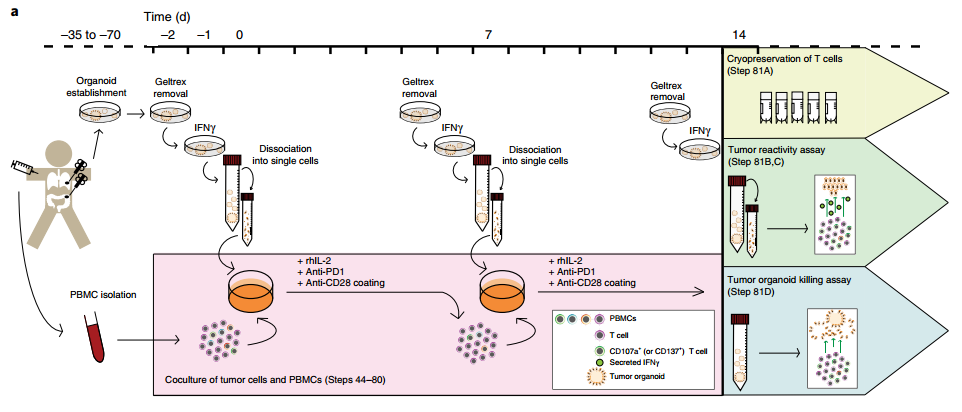
图7|肿瘤类器官与自体外周血免疫细胞共培养流程
另一条路径是直接保留肿瘤原有微环境。Neal等采用气—液界面培养方法,使患者来源肿瘤类器官在一定时期内保留T细胞、B细胞、NK细胞和巨噬细胞等天然免疫组分,并用于模拟免疫检查点抑制反应[9]。
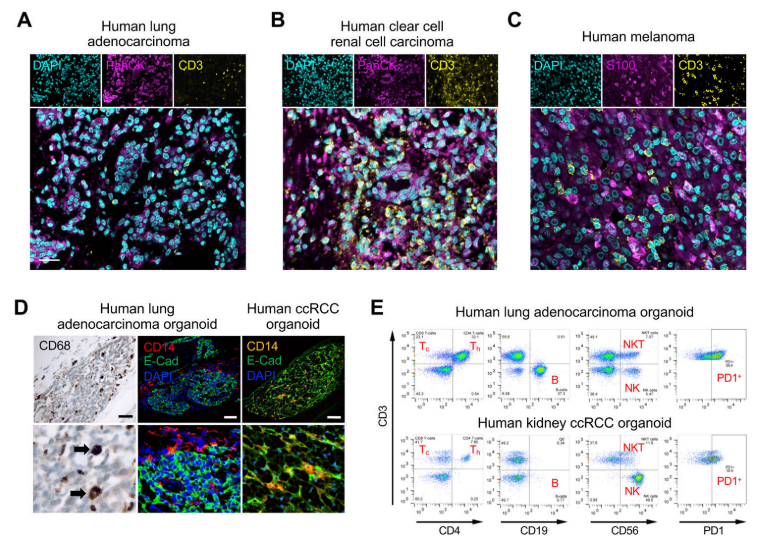
图8|气—液界面培养保留肿瘤类器官中的原生免疫微环境
这些研究说明,引入免疫系统的意义不是让模型“出现几个CD45阳性细胞”,而是重建免疫细胞的来源、定位、状态和功能。
策略五:通过工程化手段重建动态微环境
复杂类器官的发展,正在从经验依赖的静态培养转向可控制、可测量、可重复的工程化系统。
常见技术包括:
使用合成水凝胶或生物材料调节基质成分和硬度;
通过几何支架或去细胞化基质引导组织形态;
利用微流控提供连续灌流、氧梯度和剪切力;
使用器官芯片建立组织间连接;
通过3D生物打印控制细胞位置、密度和空间分层;
施加拉伸、流动、电刺激或光响应刺激。
工程化体系的价值并不是单纯使用更复杂的设备,而是将原本难以控制的培养条件转化为可测量、可调节的实验参数。
例如,Cao等构建了分层微流控类器官芯片,将毛囊类器官的批量形成、冻存保护和微针递送整合在同一体系中。动物实验显示,递送后的类器官能够形成具有成熟结构的毛囊,体现了“制造—保存—移植”一体化的工程思路[10]。
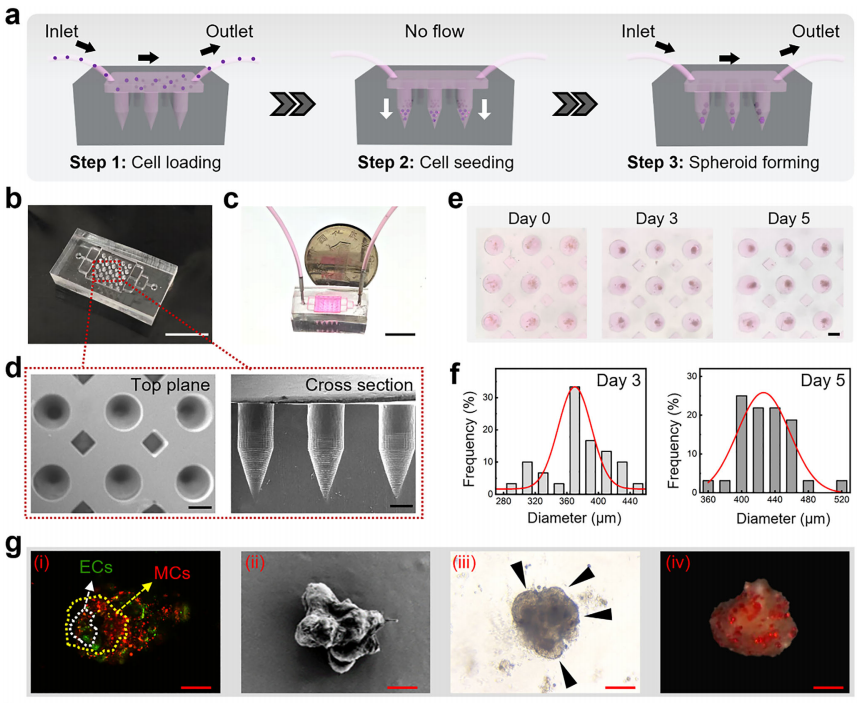
图9|分层微流控芯片批量构建毛囊类器官
在再生医学方向,2026年《Cell Biomaterials》报道了一种压电水凝胶3D生物打印策略,通过软骨和骨双层生物墨水构建软骨—骨一体化类器官,并利用机械刺激产生局部生物电信号,促进组织成熟和骨软骨缺损修复[11]。
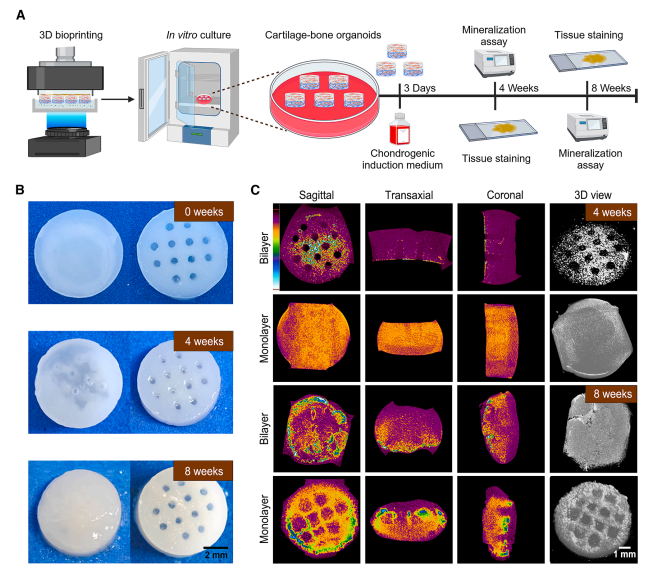
图10|3D生物打印软骨—骨一体化类器官的构建与评价
这些研究表明,工程化手段正在同时提升类器官的结构可设计性、培养可控性、生产重复性和临床转化潜力。
复杂度并非越高越好:从研究问题出发选择模型
复杂类器官需要更多细胞、更长培养周期和更严格的质量控制,也会增加成本、变异来源和结果解释难度。
因此,模型设计应遵循“最小必要复杂度”原则:只引入解决当前科学问题所必需的要素。
如果研究对象主要由上皮自主机制决定,可以优先选择结构较简单、重复性较高的类器官。
如果研究涉及免疫、间质、血管或神经互作,可以加入相应细胞模块,或者采用类器官组装体。
如果问题依赖空间梯度、组织屏障、流体环境或机械刺激,则需要考虑器官芯片、支架及动态培养平台。
如果模型面向高通量药物筛选或临床决策,还应优先考虑标准化、自动化、可量化检测及冻存兼容性。
如何评价复杂类器官模型?
复杂类器官不能只凭形态相似或标志物阳性判断是否构建成功。完整评价至少应覆盖五个维度。
1. 细胞组成
模型是否包含目标细胞类型?不同细胞的比例是否合理?可以通过单细胞测序、流式细胞术、免疫荧光和空间转录组进行分析。
2. 空间结构
模型是否形成正确的组织边界、腔室、分支或分层结构?共聚焦成像、组织透明化、空间组学和三维重建可以提供更加直观的证据。
3. 分子状态
细胞的转录和蛋白表达是否接近目标发育阶段或成人组织?是否存在异常应激、缺氧或培养诱导的非生理状态?
4. 功能输出
模型是否具备器官相关功能,例如分泌、收缩、屏障、代谢、转运或药物反应?功能验证应与具体器官和研究问题相匹配。
5. 稳定性与可重复性
不同批次、供体和操作者之间是否能够得到一致结果?是否具备标准化操作流程、过程控制和明确的质量标准?
一个真正有价值的复杂类器官,需要同时证明其生物学真实性和实验可控性。细胞类型增加,并不自动等于空间结构正确,更不等于功能已经完成整合。
从疾病建模到精准医疗
随着细胞和微环境复杂度提高,类器官的应用边界也在持续拓展。
1)发育生物学研究
多谱系模型可以用于观察不同组织层之间的诱导、迁移、融合与成熟过程。
2)疾病建模
复杂类器官能够呈现传统上皮模型难以反映的炎症、纤维化、血管异常、神经退行和代谢紊乱。
3)药物研发
模型可以同时评估候选药物对实质细胞、间质、血管和免疫组分的作用,提高药效预测的生理相关性。
4)毒性评价
长期培养和动态微环境有助于分析组织屏障破坏、免疫激活、纤维化以及多器官损伤等慢性效应。
5)精准医疗
患者来源类器官与患者免疫细胞、间质细胞等组分结合,有望提高个体化药物反应和治疗方案评估能力。
6)肿瘤研究
重建肿瘤细胞、成纤维细胞、免疫细胞、血管和细胞外基质之间的互作,有助于研究免疫逃逸、侵袭转移、血管生成和治疗耐药。
7)再生医学领域
引入血管、神经、间质及免疫调节成分,则有望改善移植物的成熟度、存活率和组织整合能力。
结语
类器官技术正在从“培养出一种细胞”走向“重建一个组织系统”。
这一过程的关键,不是无限增加细胞类型,而是识别真正决定组织功能的发育程序、空间关系、细胞互作与物理环境,并用可控、可重复的方法将其重建出来。
未来,复杂类器官模型的竞争力将不只取决于“像不像真实器官”,还取决于三个更实际的问题:能否解释机制?能否稳定复制?能否支持转化应用?
当真实性与可控性同时得到验证,复杂类器官才可能真正成为连接基础研究、药物开发和临床决策的新一代模型平台。
参考文献